moleküler biyoloji etiketine sahip kayıtlar gösteriliyor. Tüm kayıtları göster
moleküler biyoloji etiketine sahip kayıtlar gösteriliyor. Tüm kayıtları göster
16 Nisan 2019 Salı
Moleküler Biyoloji ve Hücre Biyolojisi ile İlgili Hafıza Kartları | Memory Cards about Molecular Biology and Cellular Biology 2
Tekrar etmek hem benim uyguladığım ve çok faydalı bulduğum bir teknik hem de bilimsel olarak bir bilginin kalıcı olmasında çok etkili olduğu kanıtlanmış bir teknik. Bu yazı aracılığıyla paylaştığım hafıza kartlarından hem yeni bir şeyler öğrenebilir hem de ara ara bu hafıza kartlarına geri dönerek öğrendiğiniz şeyleri kalıcı hale getirebilirsiniz. Umuyorum ki sizler için de faydalı olur, sevgilerle.

22 Mart 2019 Cuma
Metabolizma | Anabolik ve Katabolik Yollar, ATP, NAD+, FAD ve CoA

Hücrede temel olarak iki tip metabolik olay gerçekleşir: Anabolik olaylar (yapım olayları) ve katabolik olaylar (yıkım olayları). Katabolik reaksiyonlarda atomlar arası bağlar kırılır -örneğin midede proteinlerin amino asitlerine parçalanması sırasında amino asitler arasındaki peptit bağlarının kopması- ve bu kopma sonucunda bir enerji açığa çıkar. Kısacası katabolik reaksiyonlarda ΔG negatiftir. Bunun tam tersi olarak anabolik reaksiyonlarda atomlar arası yeni bağlar kurulur ve küçük parçalar bir araya getirilip büyük parçalar oluşturulur -örneğin hücrede translasyon esnasında amino asitlerin peptit bağıyla bir araya gelip proteinleri oluşturması- ve bu yeni bağların oluşturulması için enerjiye gereksinim duyulur. Kısacası anabolik reaksiyonlarda ΔG pozitiftir.
Hücredeki bazı yolaklar hem anabolik hem de kataboliktir yani hem yapım hem de yıkım reaksiyonlarını içerirler ve amfibolik olarak adlandırılırlar.


Katabolik reaksiyonların en önemlisi karbon yakıtların özellikle glukoz ve yağ asitlerinin oksitlenmesidir. Oksitlenme esnasında -örneğin, metan -> metanol -> formaldehit -> formik asit -> karbondioksit- enerji açığa çıkar çünkü bu oksitlenme esnasında belli bir enerjiye sahip olan elektronlar maddeden koparılır, düzenli halden düzensiz hale geçilir, entropi artar ve serbest enerji azalır.
Anabolik reaksiyonlarda ise düzensizlikten düzenli hale geçilir, yani entropi azalır ve serbest enerji artar. Tüm bunların olabilmesi için de yüksek enerjili elektronlara veya ATP gibi moleküller tarafından verilebilecek enerjiye ihtiyaç duyulur.

Yukarıdaki resimde de görülebileceği üzere metabolizma çok karmaşık bir yapıya sahiptir fakat bu yazıda da üzerinde durulacağı gibi metabolik yollar çok fazla ortak motife sahiptir, örneğin ATP, NAD+, FAD ve Coa. [ Çok detaylı olduğu için bu yazıda bu yolakların nasıl keşfedildiği üzerinde durulmayacaktır. Fakat nasıl hücrede hangi genlerin bulunduğuna dair araştırmalar yapan "genomics", hangi RNA'ların bulunduğuna dair araştırmalar yapan "transcriptomics" gibi alanlar varsa hücrede hangi metabolitlerin bulunduğuna dair ( genellikle mass spectrometry'yi kullanarak) araştırmalar yapan "metabolomics" adlı bir alan vardır.]
ATP:
Yukarıda da bahsedildiği gibi hücrede enerji salan katabolik reaksiyonlar (ΔG<0 font=""> ve enerjiye ihtiyaç duyan anabolik reaksiyonlar (ΔG>0) gerçekleşmektedir. Ve tahmin edebileceğiniz üzere bu iki reaksiyon arasında enerjiyi iletebilecek bir moleküle ihtiyaç duyulmaktadır.

ATP adenin bazına ve alfa, beta, gama olarak adlandırılan fosfat gruplarına bağlı ribozdan oluşur ve hücrede yukarıda bahsedilen enerji taşınımı yani "energy coupling" görevini üstlenir.

ATP'nin hidrolizi ( yani gama fosfatın ATP'den ayrılması ) olayı çok büyük ve negatif ΔG değerine sahiptir. Bir başka değişle ATP'nin hidrolizi sırasında büyük miktarda enerji salınımı gerçekleşir. Eğer bu hidroliz endegonik reaksiyonlarla birleştirilirse endergonik reaksiyonlar enzimler tarafından katalizlenebilir. Kısacası, katabolik reaksiyonlar esnasında ATP üretilir yani bu reaksiyonlarda açığa çıkan enerji gama ve beta fosfat arasında bulunan fosfoanhidrid bağında depolanır ve anabolik reaksiyonlarda yüksek enerji depolayan fosfoanhidrid bağı yıkılarak negatif ΔG değeri elde edilir.
Yukarıda anlatıldığı gibi ATP'nin enerji taşıyıcısı olarak kullanılmasının nedeni büyük ve negatif ΔG değerine sahip olmasıdır, bu değerin sebebi ise şunlardır:
- ATP üç adet negatif yüke sahip fosfat grubu bulundurmaktadır. Bu da ATP içerisinde elektrostatik itme kuvvetine sebep olmaktadır.
- Hidroliz olayı hücrede entropinin artmasını sağlamaktadır.
- Hidroliz sonucu oluşan inorganik fosfat solüsyon içerisinde resonans yaparak ATP'nin içerisinde bulunduğundan daha stabil bir durumda bulunmaktadır.
- Hidrolizden sonra su molekülleri ADP ve P'ye bağlanarak onları stabil hale getirmektedir.
Burada belirtmek gerekir ki ATP'nin enerji taşıyıcısı olarak kullanılmasının bir diğer sebebi kinetik olarak çok stabil olmasıdır. Bir başka değişle herhangi bir enzim yokken ATP hidrolizi gerçekleşmez.
NAD+ / NADH ( Nikotinamid Adenin Dinükleotit ) FAD / FADH2 ( Flavin Adenin Dinükleotit) :
NAD+ ve FAD yüksek enerjili elektron taşıyıcılarıdır.
NAD+ (Nikotinamid Adenin Dinükleotit) adından da anlaşılabileceği üzere iki nükleotitin bir araya gelmesinden oluşur. Bu iki nükleotitten bir tanesi RNA'nın da yapıtaşı olan AMP iken diğeri organik baz olarak niasin vitamininden türeyen nikotinamidi içeren nükleotittir.

Organik moleküller -örneğin Krebs döngüsü esnasında acetil- oksitlenirken bu moleküllerden kopan iki adet elektron bir adet hidrojen ile birlikte NAD+ 'a verilir ve NADH oluşturulur. Daha sonradan NADH bünyesinde bulundurduğu elektronları ya kristada bulunan elektron taşıma sistemine aktarır ve ATP sentezini sağlar ya da başka bir yolakta redükleyici ajan olarak görev yapar. Kısacası, yüksek enerjili elektronları taşıma görevini üstlenir.

FAD ( Flavin Adenin Dinükleotit) de NAD+ gibi iki adet nükleotitten oluşturmaktadır. Bu nükleotitlerden biri AMP iken diğeri riboflavin vitamininden türeyen bir nükleotittir.

FAD aynı NAD+ gibi yüksek enerjili elektronları taşımaktan sorumludur. Fakat arada iki temel vardır:
- FAD redüklenirken iki yüksek enerjili elektronla birlikte iki adet hidrojen alır ve FADH2'ye dönüşür.
- FADH2 oluşturmak için gereken serbest enerji miktarı NADH oluşturmak için gerekenden daha azdır.
Aynı ATP gibi, NADH ve FADH2 kinetik olarak çok stabil moleküllerdir. Bir başka değişle hem NADH hem de FADH2 gerekli proteinler olmadan taşıdığı yüksek enerjili elektronları ortama bırakmaz.
CoA:

CoA Vitamin B5'ten türeyen asil (açil) grubu taşıyıcısıdır.
En önemli görevi, pirüvatın ya da yağ asitlerinin oksitlenmesi sonucu oluşan asetil grubuna bağlanıp asetil CoA olarak Krebs döngüsünde rol almasıdır.
Referanslar:
Alberts, B. (2018). Essential Cell Biolog. Essential Cell Biolog. Garland Science. https://doi.org/10.1201/9781315815015
Berg, J. M., Tymoczko, J. L., & Stryer, L. (2002). Biochemistry (5th ed.). Vasa (5th ed.). New York: W.H.Freeman & Co Ltd.
Referanslar:
Alberts, B. (2018). Essential Cell Biolog. Essential Cell Biolog. Garland Science. https://doi.org/10.1201/9781315815015
Berg, J. M., Tymoczko, J. L., & Stryer, L. (2002). Biochemistry (5th ed.). Vasa (5th ed.). New York: W.H.Freeman & Co Ltd.
9 Mart 2019 Cumartesi
Moleküler Biyoloji ve Hücre Biyolojisi ile İlgili Hafıza Kartları | Memory Cards about Molecular Biology and Cellular Biology
Tekrar etmek hem benim uyguladığım ve çok faydalı bulduğum bir teknik hem de bilimsel olarak bir bilginin kalıcı olmasında çok etkili olduğu kanıtlanmış bir teknik. Bu yazı aracılığıyla paylaştığım hafıza kartlarından hem yeni bir şeyler öğrenebilir hem de ara ara bu hafıza kartlarına geri dönerek öğrendiğiniz şeyleri kalıcı hale getirebilirsiniz. Umuyorum ki sizler için de faydalı olur, sevgilerle.
20 Şubat 2019 Çarşamba
G-Proteine Bağlı Reseptörler ve Sinyal Yolakları

G-proteine bağlı reseptörler oldukça büyük bir protein ailesini oluşturmaktadır. Örnek vermek gerekirse, insan genomu yaklaşık 800 adet GPCR ( G-protein coupled receptor = G-proteine bağlı receptör) kodlamaktadır. Bu reseptörlerin hepsi hücre zarında G-proteinine bağlı bulunur ve 7 TM ( Transmembrane = transmembran yani hücre zarını boydan boya geçen ) yapıya sahiptir.
Vücutta hormon aktivasyonu, hormon salınımı, kemotaksis, ekzositoz, hücre büyümesi ve farklılaşması vb. gibi önemli ve çeşitli rolleri olan GPCR'lar şu zamana kadar dizayn edilmiş ilaçların 1/3 'ü tarafından hedef alınmıştır. Burada ayrıca belirtilmelidir ki ilaç dizaynı sırasında en çok zorlanılan adım membrandan ayrıldığı zaman yapısı bozulan GPCR'ları izole etmektir.

GPCR'ların en bilinen örneklerinden biri görmemizde büyük rol oynayan -yukarıdaki resimde yapısı gösterilen- rodopsin proteinidir.

Yukarıda sürekli olarak bahsedilen ve GPCR'lara bağlı bulunan G-protein aslında heterotrimerik G-proteindir. [ Bunun özellikle belirtilmesi gerekli çünkü monomerik G-proteinler heterotrimerik G-proteinlerden oldukça farklıdır ve aynı heterotrimerik G-proteinler gibi fizyolojik olarak çok önemlidir.] Heterotrimerik G-protein isminden de anlaşılabileceği üzere ( hetero = aynı olmayan, tri = 3) 3 farklı alt birimden meydana gelmiştir: alfa, beta ve gama. Normal şartlar altında yani ligand reseptöre bağlı değilken bu üç alt birim bir arada ve reseptöre bağlı bulunur. Ayrıca resimde de görülebileceği gibi alfa ve gama alt birimleri kovalent bağlı lipidleri sayesinde membrana da bağlı bulunur.
Reseptöre ligand bağlandığında ise öncelikle reseptörün konformasyonu değişir. Ve bu değişiklik ona bağlı bulunan heterotrimerik G-proteininde konformasyon değişikliğine yol açar. Tüm bu olayların sonucunda G-proteinin alfa alt biriminde bağlı bulunan GDP, GTP ile yer değiştirir, alfa, beta ve gama alt birimleri reseptörden ayrılır. Beta ve gama alt birimi bir arada durmaya devam ederken alfa alt birimi beta-gama kompleksinden ayrılır. Ayrıca belirtilmelidir ki G-proteinler GDP bağlı iken her zaman inaktif, GTP bağlı bulunurken ise aktiftir. Özet olarak olan tüm bu değişimlerden sonra GTP bağlı bulunan alfa alt birimi sinyal yolundaki bir sonraki adımı aktifleştirmeye hazırdır.
*Detay bilgi: Yukarıda anlatılan alfa alt birimi üzerindeki GDP'nin GTP ile yer değiştirmesi normalde GEF diye bilinen başka bir protein tarafından yapılmaktadır. Burada ise GPCR yani G-proteine bağlı reseptör GEF gibi davranıp GTP'nin lokalizasyonunu sağlamaktadır.

Alfa alt birim tarafından aktifleştirilecek diğer adım tamamen G-proteinin çeşidine bağlıdır. Eğer G-protein, Gs protein ise beta-gama kompleksinden ayrılan alfa alt birim hücre zarında bulunan adenilat siklaz enziminin yanına giderek onu aktive eder. Adenilat siklaz enzimi ise ATP'den cAMP sentezler ve cAMP molekülleri [ cAMP en önemli ikincil mesajcılardan biridir.] hücre içerisinde çeşitli yolakları tetikler.Bu yolaklardan en önemlisi PKA (Protein kinase A or cAMP dependent kinase) enzimini içerir. PKA cAMP bağlandığından aktifleşen bir kinazdır. Bir başka deyişle cAMP bağlı PKA hücre içerisinde çeşitli proteinleri fosforlayarak onları aktive veya deaktive eder.
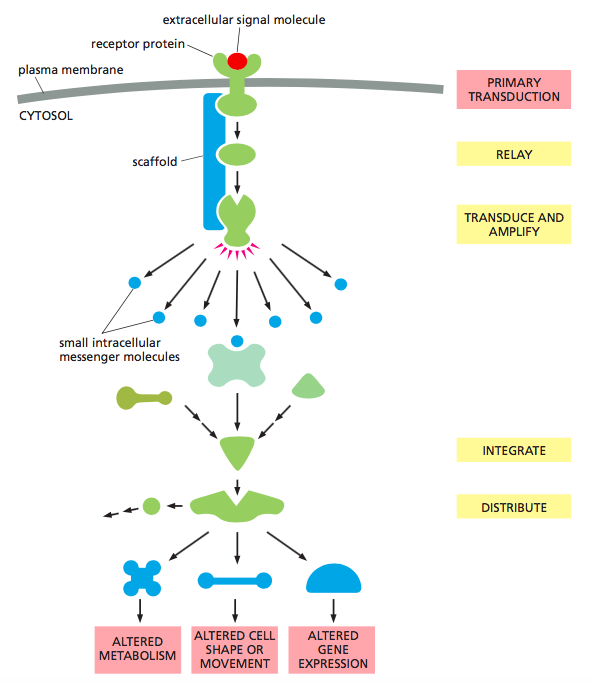
Gs proteini tarafından aktive edilen ve ikincil mesajcı olarak cAMP içeren bu yolağın en önemli özelliklerinden biri gelen sinyali amplifiye etmesidir. Bu amplifikasyonun nedeni ise adenilat siklaz enziminin birden fazla hatta çokça cAMP sentezlemesi ve PKA enziminin birden fazla proteini fosforlayabilmesidir.
Tabii ki fosforlanan proteinler sayesinde belli bir cevap oluşturulduktan bir müddet sonra bu sinyal yolağının durdurulması gerekir. Durdurulma cAMP moleküllerinin fosfodiesteraz enzimi ile parçalanmasıyla ve alfa alt biriminin kendi üzerinde bulunan GTP molekülünü hidrolize etmesiyle başarılır.
*Detay bilgi: Her ne kadar alfa alt birimi GTPase aktivitesine sahip olsa da bu hidroliz normalde GAP adı verilen bir proteinden indüklenir. Burada ise genellikle GAP proteini görev almaz. GTP hidrolizi başka bir enzim örneğin adenilat siklaz ile olan etkileşimle indüklenir.

Gq da bir heterotrimerik G-protein çeşididir ve adenilat siklaz enzimini aktive eden Gs proteininin aksine Gq fosfolipaz C enzimini aktive eder. Fosfolipaz C enzimi aynı adenilat siklaz enzimi gibi hücre membranında konumlanır. Görevi ise hücre membranında bulunan PIP2 adlı fosfolipidi diaçilgliserol ve IP3 oluşturacak şekilde parçalamaktadır.
Kısaca ligand reseptörü, reseptör G-proteini, G-protein alfa alt birimi aracılığıyla fosfolipaz C enzimini, fosfolipaz C enzimi ise PIP2 fosfolipidini aktive eder. Ardından suda çözünebilen IP3 sitoplazmaya doğru yayılır ve ER membranında bulunan ligand-bağlı Ca++ kanallarını açar yani sitoplazmadaki Ca++ konsantrasyonunu arttırır. Ca++ iyonları hem kalmoduline bağlarak hem de hücre zarında kalan DAG ( diaçilgliserol ) ile birlikte yine hücre zarında konumlanan protein kinaz C enzimini aktive ederek hücrenin liganda cevap vermesini sağlar.

Gq ve Gs gibi heterotrimerik G proteini olan Gi proteinini içeren sinyal yolağında diğerlerinden farklı olarak bir sonraki adımın aktifleşmesi alfa alt birim yerine beta-gama kompleksi aracılığıyla yapılır. Ligandın reseptöre bağlanmasıyla aktifleşen beta-gama kompleksi hücre zarında bulunan ligand-bağlı iyon kanallarına bağlanarak onları aktifleştirir. Yani sitoplazmadaki iyon konsantrasyonunu değiştirerek hücrenin gelen sinyale cevap vermesini sağlar.
Referans: Essential Cell Biology 4th Edition ( Bu linkten indirilebilir: http://www.academia.edu/33910466/ESSENTIAL_CELL_BIOLOGY_ESSENTIAL_CELL_BIOLOGY )
14 Ocak 2019 Pazartesi
Poliakrilamid Jel Elektroforezi

Elektroforez elektrik alan kullanarak nükleik asit ve proteinleri porlu yapıya sahip bir jelde ayıran ve böylece onları analiz etmemizi sağlayan bir methoddur. http://aboutmolecularbiology.blogspot.com/2017/06/agaroz-jel-elektroforezi.html adlı yazıda anlatıldığı gibi nükleik asitleri analiz etmek için agardan yapılan bir jelin kullanıldığı agaroz jel elektroforezi kullanılır. Proteinleri analiz etmek için ise bu yazıda anlatılacak olan poliakrilamid jel elektroforezi kullanılır.

Öncelikle agaroz jel elektroforezinden en büyük fark olarak poliakrilamid jel elektroforezinde proteinler agaroz jel yerine akrilamid ve bisakrilamid adlı alt birimlerden oluşan poliakrilamid jelde hareket ederler. Poliakrilamid jelin agaroz jelden farklılıklarından bir tanesi daha küçük porlar içermesidir. Böylece poliakrilamid jel aracılığıyla daha küçük maddeler ayrıştırılabilir.
Poliakrilamid jelin oluşturulması için öncelikle akrilamid ve bisakrilamid ( Burada akrilamid ve bisakrilamidin oranları oldukça önemli. Örneğin, eğer proteinler ayrıştırılacaksa 40:1 (akrilamid:bisakrilamid), nükleik asitler ayrıştırılacaksa 19:1 oranı kullanılmalıdır.) uygun bir tampon solüsyonla birlikte bir tübe konulur ve polimerizasyonlarını sağlamak amacıyla APS ve TEMED eklenir. Ayrıca belirtilmelidir ki akrilamid hem bir nörotoksin hem de kanserojen madde olduğundan jelin hazırlanışından analizine kadar her adımda gerekli güvenlik önlemleri alınmalıdır.

Agaroz jel elektroforezinin aksine poliakrilamid jel elektroforezinde jel dikey olarak dökülür ve iki temel katmana sahiptir: Yığma jeli ( stacking gel ) ve ayırma jeli ( separating gel ). Yığma jeli jelin üst kısmında bulunur ve pH'ı ayırma jeline göre daha düşüktür, pH= 6.8. Bu sayede yığma jelinde tampon solüsyondan gelen glisin amino asitleri nötr olarak bulunur. [ Konuyla ilgili daha detaylı bilgi edinmek isteyenler amino asitlerin iyonlaşabilen gruplarına bakabilirler. ] ve bu yüzden de + kutuba doğru olan hareketleri çok yavaştır. Onun tam tersine yine tampondan gelen ve negatif yüklü Cl iyonlarının + kutuba doğru olan hareketi çok hızlıdır. Böylece yığma jelinde jele yüklenen proteinler Cl iyonları ile glisin amino asitleri arasında sıkışır. Bu da tüm proteinlerin ayırma jeline aynı anda girmesini sağlar. Kısacası, yığma jelinin görevi herhangi bir ayrışma başlamadan tüm proteinleri aynı çizgide toplamaktır. Yığma jelinin alt kısmında bulunan ayırma jelinin pH'ı ise 8.8'dir. Bu sayede ayırma jelinde glisin amino asitleri negatif yüklenir ve + kutuba doğru oldukça hızlı bir şekilde hareket ederler. Başka bir deyişle, proteinler artık glisin amino asitleri ve Cl iyonları arasında sıkışmış durumda değildir, hareket etmekte ve ayrışmakta özgürdür.

Agaroz jel elektroforezinde de olduğu gibi porlu bir yapıya sahip olan poliakrilamid jel elektroforezinde proteinlerin hareketleri onların yükleri, şekilleri ve büyüklüklerinden etkilenir. Bu kadar çok değişkenin bir araya gelmesi analiz açısından zor olacağı için proteinler jele yüklenmeden önce SDS ve beta-merkaptoethanol ile bir araya getirilir. SDS negatif yüke sahip bir deterjandır ve [yukarıdaki resimde de görülebileceği gibi] hem proteinin katlanmasında rol oynayan kovalent olmayan bağları bozarak proteinlerin şekillerini bozar, onları lineer bir hale getirir hem de tüm proteinleri negatif yükle yükleyerek hepsinin + kutuba doğru hareket etmesini sağlar. Beta-merkaptoethanol ise indirgeyici bir kimyasaldır. İndirgeyici özelliği sayesinde proteinlerin içerdiği disülfit bağlarını bozar yani SDS ile birlikte proteinlerin lineer bir şekil almasını sağlar. Kısacası, beta-merkaptoethanol ve SDS ile muamale edilen proteinler şekillerini kaybeder, negatif yükle yüklenir ve lineer bir hale gelir. Böylece porlu jelde ne kadar süratle hareket edeceklerini sadece büyüklükleri etkiler.

Buraya kadar özetlemek gerekirse, SDS ve beta-merkaptoethanol ile muamele edilen proteinler yığma ve ayırıcı olarak iki katmana sahip olan jele yüklenip elektrik alana maruz kaldığında proteinler büyüklüklerine bağlı olarak farklı hızlarda + kutuba doğru hareket ederler. Bir başka değişle, proteinler büyüklüklerine göre jelde ayrılır. Ve bu ayrışma şu şekilde olur; küçük olan proteinler daha hızlı hareket edebildiğinden jelin daha alt kısımlarında büyük olan proteinler ise daha yavaş hareket ettiğinden jelin daha üst kısımlarında konumlanır.

Bu aşamadan sonra yapılması gereken tek şey proteinleri jelde görünür kılmak ve büyüklüklerini belirlemektir. Proteinleri jelde görünür kılmak için uygulanan 2 temel method vardır; Gümüş nitrat boyama ve coomassie blue boyasıyla boyama. Günümüzde gümüş nitrat boyama hem pahalı olması hem de fazla uğraştırıcı olması sebebiyle laboratuvarlarda çok fazla kullanılmamaktır. Bu tekniğin tek avantajı çok hassas olması yani coomassie blue boyasıyla tespit edilemeyecek proteinleri jelde tespit edebilmesidir. [ Yukarıdaki resim: Gümüş nitrat boyama tekniğiyle boyanan bir jel ]

Coomassie blue boyası lizin ve arjinin başta olmak üzere amino asitlere bağlanır ve mavi renkte bir ışık yayar. Her protein belli bir oranda lizin ve arjinin içerdiğinden dolayı jelin üzerine coomassie blue boyası döküldüğünde ve gerekli yıkamalar yapıldığında boya jelde sadece proteinlerin olduğu yerlerde konumlanır. Böylece de boyamanın ardından yukarıda da görüldüğü gibi protein içeren bantlar mavi renginde görülür. Ayrıca yayılan mavi ışığın şiddeti bandın içerdiği protein miktarına bağlı olduğundan coomassie blue boyasıyla proteinlerin konsantrasyonları tahmin edilebilir, dahası bradford assay methoduyla protein konsantrasyonu belirlenebilir.

Son olarak, tüm bu ayırma işlemlerinden sonra proteinlerin büyüklüğünü belirleyebilmek için jele yükleme yaparken büyüklüğü bilinen proteinler yani protein marker'ı da yüklenmelidir. Böylece yürütme işlemi bittikten sonra büyüklüğü bilinen proteinlerin bantlarıyla bilinmeyen proteinlerin bantları karşılaştırılarak proteinlerin büyüklüğü / ağırlığı belirlenebilir.
* Günümüzde laboratuvarlarda poliakrilamid jel elektroforezi genellikle daha sonra Western Blotting'de kullanmak üzere yapılır. Umarım başka bir yazıda Western Blot'u da anlatabilirim. Sevgiyle ve bilimle kalın :)
8 Haziran 2018 Cuma
Polimeraz Zincir Reaksiyonu (PCR)| 1

- Polimeraz zincir reaksiyonu 1980'li yıllarda daha sonra bu buluşundan dolayı Nobel ödülü alan Kary Mullis tarafından icat edilmiştir. (Yukarıdaki resim Kary Mullis'in hayat hikayesini anlattığı kitabının kapağıdır ve bu noktada bence eklemek gerekir ki Kary Mullis hayat hikayesinin ilginçliğiyle diğer bilim insanlarından keskin bir şekilde ayrılmaktadır.)

- PCR, DNA polimeraz enzimi sayesinde çok düşük konsantrasyonlu DNA örneklerinden bile yeni DNA zincirleri sentezleyen bir başka deyişle mevcut olan DNA fragmentini çoğaltan bir yöntemdir. Ve DNA polimeraz sadece 3'-OH ucuna yeni nükleotit ekleyebildiğinden ve bundan dolayı bir zincirin sentezini başlatabilmek için primere ihtiyaç duyduğundan PCR işlemi de primere ihtiyaç duyar.Bu sayede de (primerler sekansa spesifik olduğundan dolayı) PCR işlemiyle sadece istenilen DNA fragmentinin bilyonlarca kopyası saatler içinde elde edilebilir.
- PCR methodu kullanılarak sekanslama ve klonlama için gereken sayıda fragment elde edilebilir, bir genin yahut bir allelin genomda bulunup bulunmadığı kanıtlanabilir, babalık testi veya kriminal olaylarda şüphelilerin sayısı azaltılabilir ve laboratuvar ortamında üretilemeyen mikroorganizmalarla ilgili bilgilere ulaşılabilir.

- PCR reaksiyonu için gerekenler DNA örneği, primer, DNA polimeraz, dNTP, tampon solüsyon ve distile sudur.
- Mevcut DNA örneğinden sadece istenilen bölgenin çoğaltılması olayında en önemli şeylerden biri ileri ve geri yönlü (forward and reverse primers) primerlerin doğru dizayn edilmiş olması ve doğru konsantrasyonda olmasıdır. Örneğin, primerlerin konsantrasyonu 0.1 - 0.5 µM ( genellikle tercihen 0.2 µM ) olmalıdır. Eğer primer konsantrasyonu gerekenden fazla olursa istenmeyen bölgelerin de amplifikasyonu gerçekleşebilir. Bununla birlikte eğer primer konsantrasyonu gerekenden az olursa istenilen fragmentten yeterli miktarda elde edilemeyebilir. Tabii ki bu noktada primerlerin özellikleri de ( Tm değeri, spesifiklik vs.) çok önemlidir.
- PCR reaksiyonunda kullanılan primerler hücrede DNA replikasyonu sırasında kullanılan primerlerden farklıdır. DNA replikasyonu sırasında primeraz tarafından üretilen primerler tek zincirli RNA iken PCR sırasında kullanılan primerler tek zincirli DNAdır.
- İleriki kısımlarda görüleceği üzere PCR çok yüksek ve dramatik olarak değişen sıcaklıklarda gerçekleşmektedir. Bu yüzden de eğer normal bir DNA polimeraz (örneğin insan hücrelerinde bulunan DNA polimeraz) kullanılırsa daha reaksiyon başlamadan enzim sıcaklıktan denatüre olacağı için amplifikasyon gerçekleşmez. Bu sebepten dolayı PCR reaksiyonu için genellikle Taq DNA polimeraz, (Thermus aquaticus' tan elde edilir) ve Pfu DNA polimeraz (Pyrococcus furiosus' tan elde edilir) kullanılır. Taq DNA polimeraz Pfu DNA polimeraza göre daha ucuz olması sebebiyle araştırmalarda daha çok kullanılmaktadır ancak Pfu DNA polimerazın hata oranı Taq DNA polimeraza oranla daha düşüktür.

- DNA örneği de PCR reaksiyonu için gerekli olan şeylerden biridir. Bunun sebebi de DNA polimerazın yeni oluşturulan zincire nükleotit eklemek için şablona ihtiyaç duymasıdır. Buna ek olarak, GC oranı yüksek olan DNA örneklerinin (GC% > 60%) amplifikasyonu diğer DNA örneklerine göre daha zordur ve bu durumun en olası sebebi bu DNA örneklerinde oluşan kararlı ikincil yapılardır. Eğer araştırma esnasında böyle bir DNA örneğinin amplifikasyonu gerekiyorsa, bilim insanları genellikle glycerol, DMSO (5-20%), formamide (5-20%) veya tetramethylammonium chloride (0.01-10 mM) gibi bileşikleri PCR solüsyonuna eklemektedir.

- PCR solüsyonunu hazırlarken dikkat edilmesi gereken 2 önemli nokta vardır. Öncelikle istenmeyen kısımların amplifikasyonunu önlemek için PCR solüsyonu hazırlanırken DNA polimeraz en son ilave edilmelidir. İkinci olarak ise reaksiyonun başlamasını önlemek için tüm hazırlık aşamalarında solüsyon buz üzerinde tutulmalıdır.
3 Haziran 2018 Pazar
Hücre İskeleti | Giriş

- Yukarıdaki resimde görülen kırmızı, yeşil ve mavi renklerle işaretlenmiş olan filamentler hücre iskeletini oluşturur. Yani aslında hücre iskeleti sitoplazma boyunca dağılmış olan filamentler bütünüdür.

- Hücre iskeleti sayesinde hücreler belirli şekilleri alabilir hatta bazı özel hücreler hücre iskeletlerini tekrardan yapılandırarak değişen çevre koşullarına göre şekillerini değiştirebilirler. Ayrıca belirtmekte fayda var, hücre iskeleti hücreye şekil vermekle kalmaz, ona fiziksel dayanıklılık da verir.
- Amip ve bazı bağışıklık sistemi hücreleri hücre iskeletini oluşturan filamentlerden aktini kullanarak çevre koşullarına (özellikle bağışıklık sistemi hücreleri diğer hücrelerden salınan kimyasallara) göre hareket ederler.

- Hücre iskeleti hücreyi dış ortama adapte etmekle kalmaz bölünme, büyüme gibi özel durumlarda organelleri ve diğer hücre içi bileşenleri çeşitli yerlere taşıyarak hücre içi yapısını da değiştirir.

- Mitoz ve mayoz esnasında kromozomların ayrılması hücre iskeletini oluşturan filamentlerden mikrotübüller tarafından gerçekleştirilir. Ayrıca unutulmamalıdır ki mitoz ve mayoz sadece çekirdeğin bölünmesi olayıdır.
- Karbonhidrat, yağ ve proteinlerin oluşan ve akışkan (dolayısıyla da kırılgan) bir yapıya sahip olan plazma membranına mekanik destek vermek hücre iskeletinin görevlerinden bir tanesidir.
- Hücre iskeleti kas ve nöron gibi oldukça özelleşmiş hücrelerin fonksiyonlarını yerine getirmesini sağlar. Örneğin, hücre iskeleti kas hücrelerin kasılmadan nöronlarda ise akson ve dendritlerin oluşumundan sorumludur.
- Sitoplazmada bulunan proteinler ve mRNA'lar her zaman homojenik bir şekilde dağılmaz. Yukarıdaki resimde görülen olay da bu düzensiz dağılımın örneklerinden biridir. Detaylıca anlatmak gerekirse, bazı durumlarda mRNA'ların veya proteinlerin sitoplazmanın bir kısmında yoğunlaşması çeşitli sonuçlara sebep olur. Örneğin, yukarıdaki resimdede görülebileceği üzere bölünmekte olan bir maya hücresinde yeni oluşacak hücrenin hücrenin hangi kısmından çıkacağı ash1 olarak adlandırılan mRNA'nın hücrenin hangi kısmında yoğunlaşacağına bağlıdır. Tabii ki bu yoğunlaşma hücre içindeki organel ve diğer bileşiklerin hareket ve düzenlenmesinden sorumlu olan hücre iskeleti tarafından gerçekleştirilir. mRNA'ların düzensiz dağılmasıyla ilgili bir örneği Drosophila melanogaster'lerin gelişiminde de görebiliriz. Bu durumda yine hücre iskeleti sayesinde mRNA'lar sitoplazmanın farklı kısımlarında yoğunlaşır bu sayede de hangi kısmın kafa hangi kısmın abdomen olacağı belirlenir.

2 Haziran 2018 Cumartesi
Genlerin Yapısı Ve Ekspresyonu | 1

- Yukarıdaki resimde de görülebileceği üzere tüm canlılarda ( prokaryotlarda ve ökaryotlarda) genetik bilginin akışı şu şekildedir : DNA - RNA- Protein. DNA kullanılarak RNA'nın sentezlenmesi olayına transkripsiyon denir ve bu olay nükleusta gerçekleşir. Transkripsiyon sonucu oluşan RNA tiplerinden ( Transkripsiyon sonucunda rRNA, tRNA, non-coding RNA, mRNA gibi RNA çeşitleri oluşabilir.) biri olan mRNA'nın (mesajcı [messenger] RNA) kalıp olarak kullanılmasıyla protein sentezlenmesi olayına ise translasyon denir ve genellikle sitoplazmada ribozomlar tarafından gerçekleştirilir. ( Burada genellikle denilmesinin sebebi mitokondri ve kloroplast organellerinin kendi ribozomlarına sahip olması dolayısıyla bu organellerde de translasyonun gerçekleşmesidir.)

- Fakat genetik akışın normalde DNA-RNA-Protein şeklinde olması onun her zaman öyle gerçekleşeceği anlamına gelmez. Yukarıdaki resimde de görülebileceği üzere bu konudaki istisnalardan biri retrovirüslerdir. Retrovirüsler genomlarına göre tek zincirli (+) RNA virüsü konuk hücre tiplerine göre ise hayvan virüsü olarak sınıflandırılırlar. Genom olarak tek zincirli RNA'ya sahip olan retrovirüsler hücreyi enfekte ettiklerinde kendilerini replike edebilmek için öncelikle genomlarını çift zincirli DNA'ya çevirirler. ( Yani burada RNA-DNA şeklinde bir genetik akış olur ve akış reverse transcription yani transkripsiyon olayının tersi olarak adlandırılır.)

- Genomunu replike edebilmek için önce onu DNA'ya çevirmek zorunda olan retrovirüsler RNA'dan DNA sentezleyecek enzim yani reverse transkriptaz normal hayvan hücrelerinde bulunmadığı için onu yanlarında taşımak zorundadırlar.
- Buna ek olarak, reverse transkriptaz genel olarak 3 farklı domaine sahiptir. Birinci domain retrovirüsün genomu olan tek zincirli RNA'yı baz alarak tek zincirli DNA sentezler. Bu aşamada önemli olan noktalardan bazıları şunlardır ki reverse transkriptaz da normal DNA polimerazlar gibi sadece 5'-3' yönünde sentez yapabilir ve sentezi başlatamadığı için primere ihtiyaç duyar. İkinci domain oluşturulan DNA-RNA hibridindeki RNA zincirini yıkar. Son domain ise oluşturulan tek zincirli DNA'yı baz alarak çift zincirli DNA sentezler.

- Çift zincirli DNA sentezlendikten sonra ise bu fragment enfekte edilen hücrenin genomuna entegre edilir ve provirüs olarak adlandırılır. Örneğin, HIV virüsü bir retrovirüstür ve bağışıklık sistemi hücrelerinden olan CD4 hücrelerini enfekte ettikten sonra ilk olarak yanında taşıdığı reverse transkriptazı kullanarak genomunu çift zincirli DNA'ya çevirir ve onu çekirdeğe göndererek hücre genomuna entegre eder. Bu işlemden sonra CD4 hücreleri her bölündüğünde dolayısıyla DNA'sını replike ettiğinde virüs genomu da onunla birlikte replike olur ve yeni oluşturulan hücrelere aktarılır.
Sonuç olarak:

29 Ağustos 2017 Salı
Antimikrobiyal Peptit:Bakteriosin
Bakteriosin çeşitli bakteriler tarafından sentezlenen antimikrobiyal özelliğe sahip bir peptittir. Günümüzde antimikrobiyal özelliğe sahip olması ve insan bağırsak mikrobiyotası üzerinde fazlaca bir etkisi olmaması sebebiyle özellikle gıda koruma endüstrisi gibi endüstrilerde gittikçe popülarite kazanmaktadır. Bugünkü yazıda, gram negatif bakteriler tarafından salgınan kolisin adlı bakteriosinin yapısını ve antimikrobiyal mekanizmasını inceleyecek başka bir yazıda ise bakteriosinlerin olası kullanım alanlarını keşfedeceğiz. Umarım faydalı ve keyifli bir yazı olur. Keyifli okumalar :)
Bakteriosin antibiyotiklerden farklı olarak (antibiyotikler sekonder metabolitlerdir) ribozom tarafından sentezlenen, sentezleyen bakteri haricindeki diğer bakteriler üzerinde ölümcül etkilere sahip olan peptittir.

Yukarıdaki tabloda sol kısımda bazı bakteriosin çeşitleri, sağ kısımda ise bu bakteriosinleri sentezleyen bakteriler gösterilmektedir. Fakat tabloda bakteriosin sentezleyen bakterilerin tamamına yer verilmemiştir. Yapılan son araştırmalarla birlikte bakterilerin %99’unun en az bir çeşit bakteriosin sentezleyebildiği bilinmektedir.
Kolisin:

Kolisin gram negatif bakteriler tarafından salgılanan bakteriosin çeşididir ve etki ettiği bakteri türleri sentezleyen bakteriye evrimsel olarak yakın olan türlerdir.
Kolisin sentezleyen bakterilerde bulunan plazmidde kolisin senteziyle ilgili 3 adet gen bulunur:
Toksin geni: Bu gen kolisini sentezlemekten sorumludur.
İmmün geni: Bu gen tarafından kodlanan protein sayesinde kolisin, sentezleyen bakteriye zarar veremez.
Liziz geni : Bu gen tarafından kodlanan protein kolisinin hücre dışına salgılanmasından sorumludur.
Kolisinin 3 adet etki mekanizması vardır:

- Kolisin A, B, E1, Ia, Ib, K ve N hücre duvarında porlar oluşturarak bakterilerin hücre duvarına zarar vermekte ve böylece bakteriler üzerinde ölümcül bir etkiye sahip olmaktadır.
- Kolisin E2 ve E9 nükleaz aktivitesine sahiptir. Başka bir deyişle, kolisin E2 ve E9 hücre içine girdiğinde bakterinin DNA’sını ve RNA’sını yıkarak onu öldürmektedir.
- Kolisin M ise peptidoglikanaz aktivitesine sahiptir. Böylece kolisin M bakterilerin hücre duvarının yapısını oluşturan peptidoglikanı yıkabilmekte ve onlar üzerinde ölümcül bir etkiye sahip olabilmektedir.
Bakteriosinler her ne kadar kimyasal yapı olarak antibiyotiklere benzemese de, dirençli bakteri türlerine etki edememe özellikleri antibiyotiklere benzemekte ve bu özellik sentezleyen bakterileri kötü bir şekilde etkilemektedir. Örneğin, kolisinin normal şartlar altında ölümcül etkiye sahip olduğu bazı bakteriler geliştirdikleri çeşitli yöntemler sayesinde kolisinin bulunduğu ortamlarda bile yaşayabilmektedir. Bunlara ek olarak, bu bakteriler geliştirdikleri yöntemlere göre 3 gruba ayrılmaktadır:
Dirençli bakteriler: Bu bakteri grubu kolisini tanıyan ve onun hücreye bağlanmasını sağlayan reseptöre sahip olmadığından dolayı, kolisinden hiçbir şekilde etkilenmemektedir.
Tolerant bakteriler: Bu bakteri grubu, kolisinin hücreye bağlandıktan sonra hücre içine girişini sağlayan translokatör proteine sahip olmadığından dolayı, kolisinin çoğu etki mekanizmasını etkisiz hale getirmektedir.
İmmun bakteriler: Bu bakteri grubu sahip olduğu immün protein sayesinde, kolisini inaktive etmekte ve böylece kolisinden hiçbir şekilde etkilenmemektedir.
İmmun bakteriler: Bu bakteri grubu sahip olduğu immün protein sayesinde, kolisini inaktive etmekte ve böylece kolisinden hiçbir şekilde etkilenmemektedir.
13 Haziran 2017 Salı
Transkripsiyon: Başlama
Transkripsiyon DNA'dan RNA sentezlenmesi olayıdır. DNA nükleusta bulunduğundan dolayı transkripsiyon olayı da nükleusta gerçekleşir.

Transkripsiyonda görev yapan ana enzim RNA polimerazdır. RNA polimeraz ribonükleotit trifosfattaki fosfat bağının enerjisini kullanarak ribonükleotitlerin arasındaki bağın yani fosfodiester bağının oluşmasını sağlar. RNA polimeraz sayesinde ribonükleotitlerin polimerleşmesi sağlanır başka bir deyişle RNA oluşturulmuş olur.

Prokaryotlar tek tip RNA polimeraza sahiptir. Ökaryotlar ise 3 tip RNA polimeraza sahiptir. Bu 3 RNA polimerazın görevleri şu şekildedir:
- RNA polimeraz I rRNA'ların sentezlenmesinden sorumludur.
- RNA polimeraz II mRNA ve snRNA'ların sentezlenmesinden sorumludur.
- RNA polimeraz III 5S rRNA ve tRNA'ların sentezlenmesinden sorumludur.

RNA polimeraz DNA'ya promotor denilen bir bölgeden bağlanır. Promotorun diğer DNA bölgelerinden farkı daha fazla adenin ve timin içermesidir. Başka bir deyişle promotor diğer DNA bölgelerine oranla daha az hidrojen bağı içermektedir. Böylece gen transkripte olacağı zaman DNA sarmalı kolayca açılabilmektedir.

Bakteri ve ökaryotlar promotorlarında farklı bölgelere sahiptir. Bakterilerin promotorunda pribnow kutusu ökaryotların promotorlarında ise TATA kutusu bulunmaktadır.

Transkripsiyonun başlangıç aşamasında, bakterilerin RNA polimerazı sigma alt birimi sayesinde promotoru tanır ve promotora bağlanır. Sigma alt birimi promotora bağlanış gerçekleştikten sonra RNA polimerazdan ayrılır.

Ökaryotlarda ise durum daha karmaşıktır. Ökaryotlarda RNA polimeraz promotora bağlanmadan önce TFIID,TFIIA,TFIIB ve TFIIH gibi transkripsiyon faktörleri promotoru tanır ve bağlanır. Bu faktörler RNA polimerazın promotoru tanımasına ve bağlanmasına yardımcı olur. RNA polimeraz promotora bağlandıktan sonra TFIIH ATP enerjisi kullanarak RNA polimerazı fosforlar ve onun senteze başlamasını tetikler.
Kaydol:
Kayıtlar (Atom)
-
 3 bilyon baz çiftinden oluşan insan genomu yaklaşık olarak 1 metredir ve 1 metreden oluşan insan genomunun 2 μm uzunluğundaki nükle...
-
 Yukarıdaki resimde ökaryotik hücrelerin genomunda bulunan genlerin tipik yapısı gösterilmektedir. DNA düzeyinde incelemeye başlarsak,...
-
 DNA Polimeraz: DNA replikasyonunda görev alan temel enzim DNA polimerazdır. DNA polimeraz nükleotitlerin arasındaki fosfodiester bağının o...